心筋が「強い」とは何が大きいことか――Ca・筋節・壁から心室圧へ
公開
目次
「この患者は収縮性が落ちている」と言うとき、根拠になっているのはたいていEFの低さ、壁運動の悪さ、あるいは低い心拍出量である。しかしEFは心室容積が変化した割合、心拍出量は1分間の流量であり、どちらも心筋そのものの性質ではない。同じ心筋でも、血圧が高ければEFは下がり、血液量が少なければ心拍出量は下がる。
このコースでは、心筋・心室の収縮性(contractility、inotropy)を「負荷と心拍数をそろえて比べたときに残る、収縮の強さの違い」として扱う。そのうえで、この違いがEF・圧・流量・充満圧という観測量へどう写るのかを、筋節から閉じた循環まで順にたどる。第1回はその出発点として、心筋細胞が力を生む仕組みと、その力が心室の圧になるまでの変換を整理する。
この回の問いは、「心筋が強くなった」と言うとき、細胞の中の何が変わり、心室では何が大きくなるはずなのか、である。読み終えたときに、Ca量・Ca感受性・最大張力の違いを一つの式で区別し、同じ心筋応力でも心室の大きさや壁厚によって圧が変わる理由を説明できることを目標にする。
収縮性は「何を固定して比べたか」で決まる
教科書では収縮性を「前負荷や後負荷によらない収縮能力」と説明することが多い。ところが、完全に負荷の影響を受けない指標は見つかっていない。摘出犬心で前負荷・後負荷・変力刺激を独立に動かした古典的研究でも、駆出期や等容収縮期の指標はいずれも負荷の影響を受け、収縮末期圧容積関係でさえ「比較的広い負荷範囲で影響を受けにくい」にとどまった1)。したがって実際の定義の中身は、「何を同じにして比べたか」である。
本コースでは二つの力の増し方を区別する。一つは、心筋が引き伸ばされることで同じ刺激から大きな力が出る現象(Frank–Starling機構、長さ依存性活性化)。もう一つは、同じ長さ・同じ負荷でも出せる力そのものが変わる現象で、狭い意味の収縮性の変化とはこちらを指す2)。細胞の実験ではこの二つを分けやすいが、心室と循環のレベルでは二つが同時に動く。後の回で、観測量から収縮性を逆算することが難しい理由の多くはここにある。
興奮から力まで:Caは架橋に「許可」を出す
活動電位がT管に達するとL型Ca電流が流れ込み、それを引き金に筋小胞体のリアノジン受容体からCaが放出される。細胞質Caが上がるとトロポニンCにCaが結合し、トロポミオシンの位置がずれて、ミオシン頭部がアクチンに結合できるようになる。架橋はATPの加水分解に伴う構造変化で力を発生し、条件が許せば筋を短縮させる。弛緩では、SERCAによる筋小胞体への取り込みやNa–Ca交換による排出で細胞質Caが下がり、トロポニンからCaが外れ、架橋が解離する3,4)。
この鎖をスイッチの一方通行として描くと、収縮を強める道が一つしかないように見える。実際には少なくとも三つある。Ca一過性を大きくする道(Ca供給)、同じCa濃度でより多くの調節単位を活性化する道(Ca感受性)、活性化された単位が生む力や架橋の数・速度を変える道(最大張力と架橋動態)である。β刺激は主に第一の道を通るが、トロポニンIのリン酸化などを介して弛緩も速める。マウス心筋ではPKAによるトロポニンIのリン酸化が筋フィラメント自体の弛緩を速めたと報告されている5)。臨床の強心薬を一つの「強さ」のつまみにまとめられないのはこのためである。
三つの道を区別するには、Ca濃度と定常張力の関係を要約したHill式が便利である。
T_ss は一定のCa濃度で十分に待ったときの張力、T_max は最大張力、K は張力が半分になるCa濃度(小さいほどCa感受性が高い)、n は曲線の急峻さを表すHill係数である。Ca供給を増やすことは同じ曲線を右上へ登ること、Ca感受性を上げることは曲線を低Ca側へずらすこと、最大張力を上げることは曲線全体を縦に拡大することに当たる。三つはどれも「張力が増える」という結果を生むが、式の中で動く項が違う。ただしこれは定常状態の近似である。一拍の中の張力はCaの瞬時値だけでは決まらず、架橋の状態がどう移ってきたかという履歴にも依存する。nも協同性の要約であり、Ca結合部位の数そのものではない。
筋節長は最大張力とCa感受性の両方を変える
Frank–Starling機構を細胞レベルで見ると、筋節が長いほど同じCaから大きな力が出るという長さ依存性活性化になる。Zhangらはラット心室の透過化筋束で、筋節長を変えたときの最大Ca活性化力と受動力、そしてpCa–力関係を測定した6)図1。
図1:筋節を伸ばすと、最大の力とCaへの反応が同時に変わる

Zhangら(2017)原著Fig. 1、ラット心室の透過化筋束(20–22°C)。a:横軸は筋節長、縦軸は力。黒丸は最大Ca活性化力、白丸は受動力(n=6筋束)。b:筋節長1.9 µm(白丸)と2.3 µm(塗りつぶし丸)のpCa–力関係(n=10)。縦軸はT₀(1.9 µmでの最大力)で表した力、点線は2.3 µmの曲線をその最大値で正規化したもの。横軸pCa(=−log₁₀[Ca²⁺])は右へ行くほど値が小さく、右ほどCa濃度が高い。誤差棒はSEM。生体の一拍やヒト心室の圧を直接示す図ではない。6)
© 2017 Zhang et al., eLife 6:e24081, Fig. 1. doi:10.7554/eLife.24081.003。原図は改変せず掲載。図題・説明・代替テキストは本稿による日本語説明。 · CC BY 4.0
図の左では、筋節長が1.9 µmから2.3 µmへ伸びると最大Ca活性化力が増え、同時に受動力も増えている。右では、長い筋節の曲線が縦に高いだけでなく、その最大値で正規化した点線も、立ち上がりの範囲では短い筋節の曲線より左側(pCaの大きい側、つまりCa濃度の低い側)にある。最大値で正規化しても、長い筋節はより低いCa濃度で同じ相対的な力に達する。Hill式の言葉でいえば、筋節を伸ばす操作は T_max を大きくし、K を小さくする。なお正規化しているので最大値付近では二つの曲線は重なり、図からずれの幅を数値として読み取ってはいない。前負荷による力の増加は、フィラメントの重なりが幾何学的に増えるだけの現象ではなく、Ca感受性の変化を含む。Zhangらはこの長さ依存性に薄いフィラメントと太いフィラメントの両方の構造変化が関わると論じている6)。
伸展からの時間にも注意が要る。ラットと猫の心筋では、伸展直後の力の増加はCa一過性の増大を伴わず、その後数分かけて進む遅い力の増加ではCa一過性も増えていた7)。「StarlingはCaと無関係」とも「伸ばすと直ちにCa放出が増える」とも言い切れない。本コースは周期定常状態の比較だけを扱うので、この遅い応答の時間経過には立ち入らないが、「前負荷の効果」と「収縮性の効果」の境界が実験の定義に依存することは覚えておきたい注1。
張力と短縮は別の量である
筋は、負荷が大きいほどゆっくりしか縮めない。同じ活性化状態・同じ初期長で比べると、短縮しない等尺性収縮で張力が最も大きく、負荷がなければ短縮速度が最も大きい(筋が引き伸ばされながら力を出す伸長性収縮はこの比較の外にある)。同じ活性化状態でも、心室が高い大動脈圧に向かって駆出するときには、壁の張力は大きく短縮は小さい。低い圧に向かうときには張力は小さく短縮は大きい。
EFは短縮の量を、血圧や心室圧は張力の大きさを反映する。力–速度関係が示すのは、活性化が同じなら張力と短縮が互いに引き換えになるということであり、収縮性の変化は、どちらか一方だけではなくこの引き換えの関係そのものを動かす。心室でも、高い圧に向かって駆出する拍ほど、駆出を終える容積は大きくなる。次回扱う収縮末期圧容積関係(ESPVR)は、負荷を変えた一連の拍の収縮末期の点がつくる関係である。力–速度関係そのものではなく、収縮末期という時相、筋の長さ、負荷の履歴という条件のついた到達点の関係であり、あらゆる圧容積状態の厳密な上限を表すものでもない。CircleHeartが用いるLand 2017型の筋フィラメントモデルは、ヒト心筋細胞の急な長さ変化や一定速度の短縮に対する張力応答を較正データに含むとされ、速度に依存する張力を状態変数として持つ8)。
壁の応力から心室の圧へ
筋の張力と心室の圧は同じ物理量ではない。つなぐのは形状と力の釣り合いである。最も単純な薄肉球で考える。内腔半径 r、壁厚 h の球を赤道で半分に切ると、内外の圧差 P_tm が半球を押し広げる力は P_tm·πr²、切り口の壁が引き戻す力は壁応力 σ に断面積 2πr·h を掛けたものになる。両者の釣り合いから次の式が出る。
σ は心筋が単位断面積あたりに出す力(Pa)で、細胞の「張力」の実体に近い量である。P_tm は経壁圧、すなわち腔内圧から心膜・胸腔などの外圧を引いたものである。この式から臨床的に重要な三つのことが読める。第一に、同じ心筋応力でも、内腔が大きく壁が薄い心室の圧は低い。拡張した心室は、同じ圧を出すためにより大きな壁応力を必要とする。第二に、壁が厚く内腔が小さい心室は、心筋一本一本が弱くても高い圧や高い「心室の硬さ」を示しうる。高血圧とHFpEFの患者を比べた臨床観察では、心室レベルの収縮末期エラスタンスは両群とも対照より高かったが、応力で補正した心筋短縮などの収縮指標は、高血圧で心不全のない群では高く、HFpEFの群では低かった。この差は幾何を調整した後も残っており、壁厚や内腔の大きさだけで説明し切れるものではない。それでも、心室の硬さと心筋の収縮性を区別する必要を示す例になる9)。第三に、測っている圧が腔内圧か経壁圧かで、心筋が実際に引き伸ばされている程度の読み方が変わる。
薄肉球の式は、厚く異方性のある左室壁や三日月形の右室、左右で共有される中隔の局所応力を正確に計算する式ではない注2。それでも、「材料の強さ」「形状」「外圧」が掛け合わさって心室の圧になるという構造を示すには十分である。以後の回で「心室の収縮性」と言うときは、心筋の性質に形状と外圧が加わった心室レベルの性質であることを忘れないようにしたい。
CircleHeartでは、因果の鎖のどこを動かすのか
CircleHeartは、規定したCa波形から出発し、Land 2017型の筋フィラメントモデルでCa結合と架橋の状態を解き、左室自由壁・中隔・右室自由壁・両心房の壁応力を求める。心室はTriSeg型の三壁構造で、三つの壁が接合部で力を釣り合わせる条件から各腔の圧が決まる10)。その圧で弁が開閉し、体循環と肺循環を血液が流れ、次の拍の充満が決まる図2。
図2:興奮から循環まで:モデルが規定する部分と計算する部分
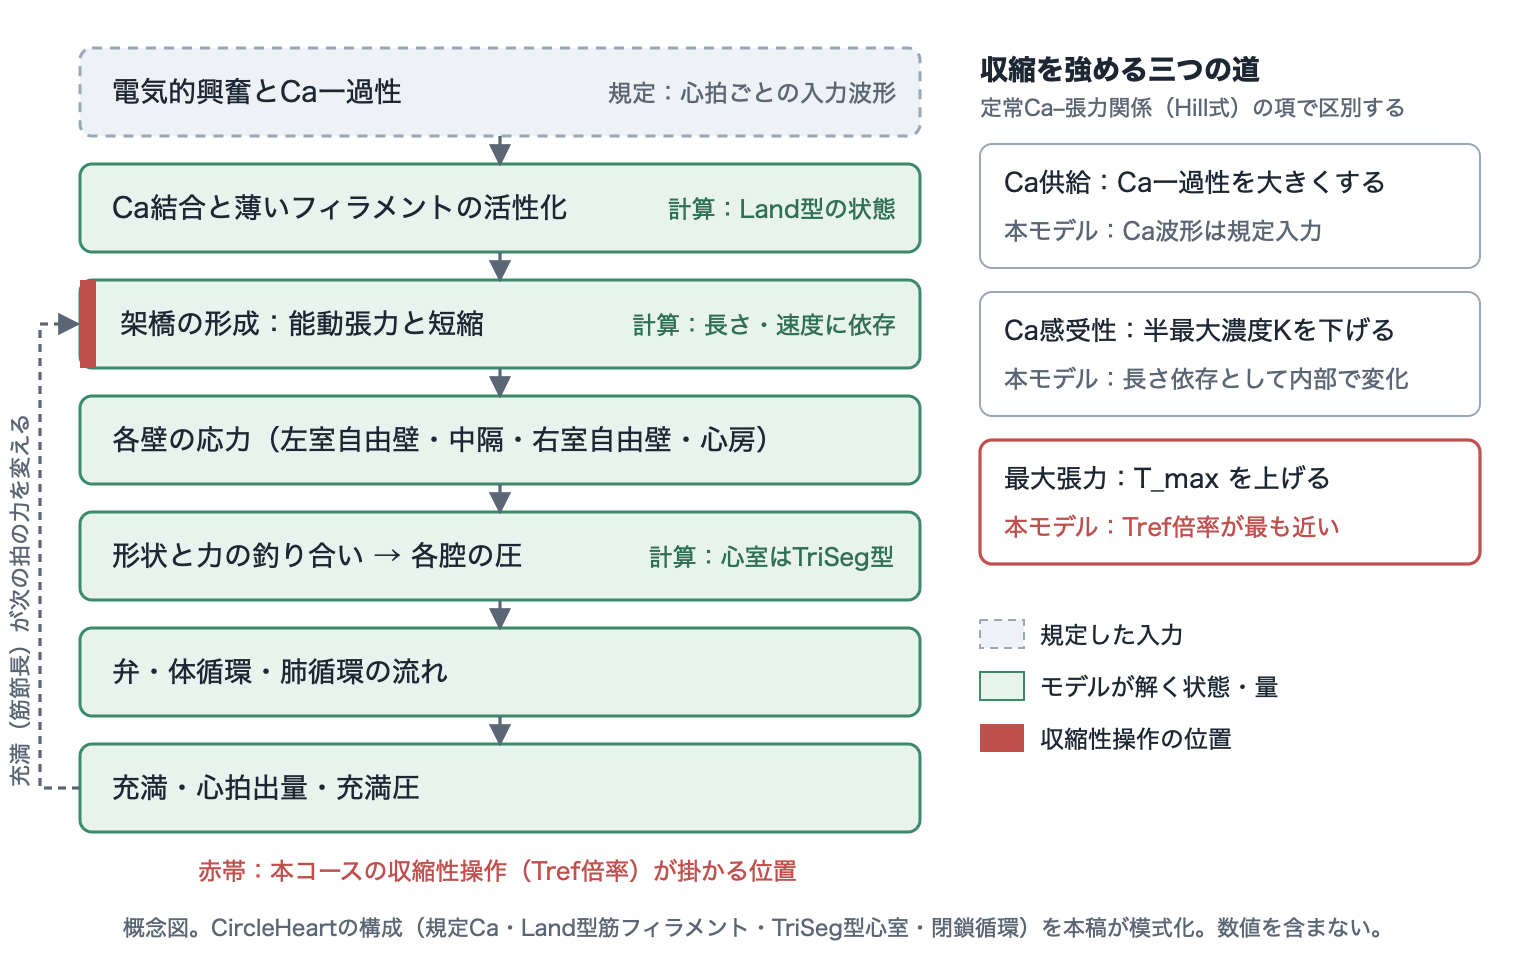
左列は電気的興奮から心拍出量・充満圧までの因果の鎖。破線枠は入力として規定した部分(Ca波形)、実線枠はモデルが状態方程式や力の釣り合いとして解く部分。赤帯は本コースの収縮性操作(能動張力の基準値Trefへの倍率)が掛かる位置を示す。点線の戻り矢印は、充満(筋節長)が次の拍の力を変える経路。右列はHill式の三つの項と、それぞれが本モデルでどう扱われているかの対応。数値を含まない概念図。
本稿の自作概念図。CircleHeartの構成(規定Ca波形、Land 2017型筋フィラメント、TriSeg型三壁心室、閉鎖循環)を模式化したもの。原著図の転載・トレースではなく、座標・数値を含まない。
本コースで「収縮性を変える」と言うとき、実際に動かしているのはLandモデルの能動張力の基準値 Tref に掛ける倍率である。左室の操作は左室自由壁と中隔に同じ倍率を掛け、右室の操作は右室自由壁に掛ける。Tref は張力を出力する側の係数なので、Hill式でいえば T_max を拡大縮小する操作に最も近く、Ca一過性の大きさや K を直接には変えない注3。
逆に、この倍率はEes、EF、心拍出量、薬剤の用量の倍率ではない。Trefを固定しても、筋節長・架橋の状態・心室の形・負荷が変われば張力と圧は変わり、長さ依存性活性化もモデルの中で働き続ける。Ca処理(SERCAやリアノジン受容体の働き)、β刺激、心拍数に応じたCa負荷の変化(force–frequency関係)、虚血による収縮低下はこの操作に含まれない。
モデルを使う理由は、臨床ではほぼ不可能な比較ができるからである。患者で収縮性が変わるとき、血圧・心拍数・静脈トーン・神経体液性反応も同時に変わる。モデルでは、同じ解剖・同じ血管条件のまま一つの設定だけを変え、それぞれ整定した周期定常状態を比べられる。本コースの比較はすべてこの形をとる。設定を変えてから新しい状態に落ち着くまでの経過や、その速さは扱わない。
確認
確認問題
左室のTref倍率を基準より20%下げた。次のうち、この操作の意味として最も正確なのはどれか。
- 左室EFが基準の0.8倍になるように設定した。
- 左室のEes(収縮末期エラスタンス)を0.8倍にした。
- 同じ筋節長・同じ活性化状態で出せる能動張力を小さくした。EF・Ees・心拍出量がどれだけ変わるかは、形状・負荷・循環との釣り合いで決まる。
- Ca感受性を下げ、Hill式の K を大きくした。
答えと解説
正解: 同じ筋節長・同じ活性化状態で出せる能動張力を小さくした。EF・Ees・心拍出量がどれだけ変わるかは、形状・負荷・循環との釣り合いで決まる。
Trefは能動張力の出力側に掛かる係数で、Hill式では T_max の拡大縮小に最も近い。EFやEesは心室と循環の釣り合いの結果として決まる観測量・解析量であり、入力の倍率と同じ比率で動く保証はない。K を直接動かす操作でもない。
確認問題
薄肉球近似で、壁応力と壁厚が同じまま内腔半径だけが1.5倍になった。経壁圧はどうなるか。
- 1.5倍になる
- 変わらない
- 約0.67倍(2/3)になる
- 約0.44倍(4/9)になる
答えと解説
正解: 約0.67倍(2/3)になる
P_tm = 2σh/r なので、σ と h が同じなら P_tm は r に反比例する。半径1.5倍で圧は2/3。拡張した心室が同じ圧を出すには、壁応力を1.5倍にするか壁を厚くする必要がある。実際の心室は厚壁・非球形なので、これは構造を理解するための近似である。
心筋の力は、形状と外圧を経て心室の圧になる。次回は、その心室を圧と容積の平面に置き、同じEFを示す二つの心室が本当に同じ収縮性を持つのかを調べる。
注釈
- 注1前負荷の効果と収縮性の効果の境界↩
筋節長を変えると、最大張力とCa感受性がともに変わる。そのため「前負荷を増やしたら収縮性も上がった」と表現する文献もあれば、長さ依存性はStarling機構であって収縮性とは呼ばない文献もある。本コースでは、同じ長さ・同じ負荷で比べたときの違いを収縮性と呼ぶ操作的な定義を採る。どちらの定義を採るかで事実は変わらないが、比べている条件を明示しないと議論がすれ違う。
Zhangらの測定は定常Caでの透過化標本、Allen & Kuriharaの観察は無傷の筋での伸展後の時間経過である。前者の曲線を一拍の瞬時の構成則として使うことはできず、後者の遅い応答は本コースの周期定常比較の対象外である。
- 注2薄肉球の式の仮定と、CircleHeartの力の釣り合い↩
P_tm = 2σh/r は、壁が十分に薄い、球形、均一で等方的、準静的という仮定のもとでの釣り合いである。応力と圧はどちらも単位面積あたりの力(Pa=N/m²)で次元は同じだが、応力は壁の断面に働く力、圧は内腔の面を押す力で、物理的な意味が違う。壁張力(応力×厚さ、N/m)は次元も異なる。「張力」という言葉がどれを指すかに注意する。
CircleHeartの心室は、左室自由壁・中隔・右室自由壁の三つの球冠が共通の接合円で結ばれるTriSeg型の構造をとる。各壁の繊維応力とひずみから壁の仮想仕事を求め、それが圧×容積変化の仕事と一致するように左右の腔圧を決め、中隔の形と接合部の半径は力が釣り合う位置に落ち着く。原著TriSegの幾何と結合の考え方を土台にしているが、原著の筋線維モデルや適応機構をそのまま用いているわけではない10)。
- 注3Land型モデルとTref倍率の位置↩
Land 2017型モデルは、トロポニンへのCa結合、薄いフィラメントの遮断状態、弱結合・強結合の架橋集団、架橋のひずみを状態変数として持ち、Ca結合の感受性と最大張力の係数に筋節長依存性、架橋のひずみに速度・履歴依存性を持つ。能動応力は、長さ依存の係数、Tref、架橋状態の積として計算される。したがってTref倍率は同じ状態から出る能動張力を一様に拡大縮小する。
Landらの原著は、ヒト心筋細胞の測定に基づく収縮モデルとして報告されている。本稿の執筆では原著の抄録とモデル実装の記述を確認しており、原著の全図・全表を精読した根拠として引用してはいない8)。TrefやCa感受性のパラメータは器官全体の較正を含む値であり、特定患者の測定値ではない。Ca波形は外から与える入力で、心拍数を変えるとその時間幅も変わる。
文献
- Kass DA et al. Comparative influence of load versus inotropic states on indexes of ventricular contractility: experimental and theoretical analysis based on pressure-volume relationships. Circulation. 1987;76:1422–1436. 摘出・支持循環下の犬心室。前負荷・後負荷・変力状態を独立に操作し、各種収縮指標の負荷依存性を比較。PubMed抄録で確認、全文未読。↩
- Solaro RJ. Introduction: Contractility and the Integrative Biology of the Myocardium. In: Regulation of Cardiac Contractility. Morgan & Claypool Life Sciences; 2011. 専門教科書。収縮性とFrank–Starling機構の用語の整理。公式公開本文の該当章を確認。↩
- Solaro RJ. Control of Contractility Is at the Cellular Level of Organization. In: Regulation of Cardiac Contractility. 2011. 専門教科書の章。細胞内Caの供給と回収。公式公開本文を確認。↩
- Solaro RJ. Left Ventricular Diastolic and Systolic Pressure, Ejection, and Relaxation Reflect Sarcomeric Mechanical Properties. In: Regulation of Cardiac Contractility. 2011. 専門教科書の章。架橋・ATP・調節タンパクと心室の圧・弛緩の関係。公式公開本文を確認。↩
- Kentish JC et al. Phosphorylation of troponin I by protein kinase A accelerates relaxation and crossbridge cycle kinetics in mouse ventricular muscle. Circ Res. 2001;88:1059–1065. マウス心筋の実験原著。PKAによるトロポニンIリン酸化と弛緩・架橋動態。詳細抄録で確認、全文未読。↩
- Zhang X et al. Distinct contributions of the thin and thick filaments to length-dependent activation in heart muscle. eLife. 2017;6:e24081. ラット心室の透過化筋束の実験原著。Fig. 1(筋節長と最大力・受動力、pCa–力関係)を改変せず掲載(CC BY 4.0)。結果・方法・図注を確認。↩1↩2↩3
- Allen DG, Kurihara S. The effects of muscle length on intracellular calcium transients in mammalian cardiac muscle. J Physiol. 1982;327:79–94. ラット・猫心筋の実験原著。伸展直後と遅い応答でのCa一過性。詳細抄録で確認、全文未読。↩
- Land S et al. A model of cardiac contraction based on novel measurements of tension development in human cardiomyocytes. J Mol Cell Cardiol. 2017;106:68–83. ヒト心筋細胞の測定に基づく収縮モデルの原著。CircleHeartの筋フィラメントモデルの源流。抄録と著者稿のライセンス表示を確認、PDF本文・図は未確認。↩1↩2
- Borlaug BA et al. Contractility and ventricular systolic stiffening in hypertensive heart disease: insights into the pathogenesis of heart failure with preserved ejection fraction. J Am Coll Cardiol. 2009;54:410–418. 対照617例、高血圧719例、HFpEF 244例の観察研究。Ees・PRSW・応力補正短縮はいずれも心エコーによる非侵襲推定。抄録と図説明を確認。↩
- Lumens J, Delhaas T, Kirn B, Arts T. Three-wall segment (TriSeg) model describing mechanics and hemodynamics of ventricular interaction. Ann Biomed Eng. 2009;37:2234–2255. 三壁心室モデルの原著。幾何と力の釣り合いによる心室間相互作用の定式化。出版社本文と図注を確認(CC BY-NC 2.0)。CircleHeartの現行実装はこの幾何・結合を土台とするが原著の全機構を用いてはいない。↩1↩2